9月28日,国际学术期刊Nature Structural & Molecular Biology在线发表了中国科学院分子细胞科学卓越创新中心(生物化学与细胞生物学研究所)吉喆组联合芝加哥大学Robert Keenan与MRC分子生物学实验室Ramanujan Hegde团队的合作研究成果:"Cotranslational membrane protein biogenesis by an EMC-bound translocon"。该研究整合选择性核糖体图谱分析、冷冻电子断层扫描和位点特异性光交联等技术,揭示了内质网膜蛋白复合物(EMC)在多跨膜蛋白共翻译插入中的底物范围、招募时机与机制,阐明了EMC与多跨膜转运子(MPT)协同促进多跨膜膜蛋白生成的分子图景。
长期以来,Sec61被视为膜蛋白插入的核心通道,但近年研究发现许多多跨膜蛋白经Oxa1超家族插入酶替代途径插入。本研究中,选择性核糖体图谱分析显示,多跨膜蛋白是EMC富集程度最高的类别,且富集随跨膜结构域(TMD)数量增加而升高;约半数多跨膜转录本同时富集EMC和MPT,几乎没有仅被EMC富集者,表明EMC被招募至已结合MPT的核糖体。以ABCD4为例,MPT在其前两个TMD(TMD1–TMD2)出现时即被招募,EMC随后在下一对TMD(TMD3–TMD4)出现时被招募,且MPT并未解离,体外实验验证了这种顺序招募。
位置分析显示,EMC通常在MPT之后到达,一旦结合便持续至合成完成,不受MPT和OST-A动态变化影响。EMC在2至8个TMD出现时到达,与MPT中央膜腔可容纳约6至8个TMD、胞质前庭可屏蔽约60至90个残基,其容量上限与上述招募时机吻合;序列早期含大量胞质残基者较早招募EMC,反之较晚。这些结果支持一个模型:当新生链开始超出MPT的胞质或膜内容量时,EMC被招募。
冷冻电子断层扫描显示,EMC的楔形胞质结构域与核糖体、PAT复合物围成一个远大于MPT胞质前庭的半封闭腔室,可屏蔽无法被MPT容纳的底物;EMC与GEL的亲水槽位于组装体相反两侧,为TMD提供至少两条入膜途径;EMC另一侧的保持酶表面位置与Cav1.2组装中间体的结合模式兼容。光交联显示,2-TMD中间体的TMD1–TMD2对位于GEL与Sec61之间,而在4-TMD中间体中,TMD1–TMD2已迁移至EMC的插入酶侧,新插入的TMD3–TMD4对则位于GEL附近,表明EMC的插入酶侧可作为共翻译TMD伴侣。
该研究确立了EMC在多跨膜膜蛋白合成中的普遍原则:EMC一旦结合便稳定保持至合成完成,其招募取决于多跨膜转运子MPT的容纳能力,底物范围与MPT仅部分重叠;GEL因靠近核糖体出口通道可能具有优先进入权,EMC负责插入被GEL跳过的TMD对,这也可解释某些生物缺乏GEL的现象。EMC作为插入酶、TMD伴侣和保持酶的多种活性与MPT协调,适应人类基因组编码的约2500种多跨膜膜蛋白多样的拓扑需求。鉴于膜蛋白生物合成缺陷是众多疾病的基础,该发现为理解相关疾病机制及纠正错误折叠或错误定位膜蛋白的干预策略开发奠定了重要基础。
美国芝加哥大学的Madeline G. Rollins、 Josephine Tang、 Arunkumar Sundaram,英国医学研究委员会分子生物学实验室(MRC-LMB)的Haoxi Wu,和美国西北大学的万昱、李倩茹为该文的共同第一作者。 芝加哥大学Robert J. Keenan教授,MRC-LMB的Ramanujan S. Hegde教授和分子细胞卓越中心吉喆研究员为共同通讯作者。该工作获得核糖核酸功能与应用重点实验室以及“尚思学者(青年)”项目的资助。
原文链接:https://www.nature.com/articles/s41594-026-01889-2
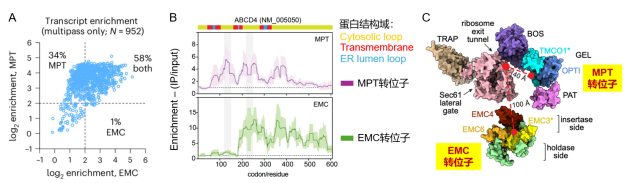
EMC与MPT在多跨膜蛋白合成中协同招募的分子机制